67 гостей
VIVOS VOCO: Б.М. Медников, Е.А. Шубіна, М.Н. Мельникова, "Молекулярні механізми генетичної ізоляції"
Дарвін не дарма назвав свою головну працю "Походженням видів". Він розумів, що видоутворення - основний процес біологічної еволюції. Здається дивним, що в біології немає до сих пір загальноприйнятого визначення виду. Всі ми розуміємо, що кінь і зебра, тверда і м'яка пшениці - різні види. Але спроби дати визначення цієї структурної одиниці класифікації, загальна для всієї живої природи, наштовхуються на серйозні труднощі.
Термін "вид" вперше був запропонований ще Аристотелем як сукупність об'єктів, що об'єднуються за схожістю. Лише через 2000 років, в 1693 р англійський натураліст Дж.Рея надав поняттю "вид" біологічний сенс. Згідно Рею, біологічний вид - це сукупність особин, які об'єднуються за двома критеріями: практичної тотожності морфологічних ознак і вільного схрещування з відтворенням ознак в потомстві.
Більшість дослідників тепер приходять до висновку, що морфологічний критерій для визначення виду недостатній. Генетики схиляються до другого критерію, виходячи з якого випливає, що самостійність виду підтримується генетичної ізоляцією. Н.В.Тимофеев-Ресовський в одній з лекцій з властивою йому експресією стверджував, що без генетичної ізоляції не було б еволюції - всі виникаючі види в результаті схрещування між собою "заболочуватися" б, був би суцільний scrumbled, Дурниця. Не може бути еволюції без генетичної ізоляції - обмеження обміну генами між виникаючими видами. Це твердження справедливе, однак існують різні механізми, що перешкоджають міжвидового схрещування в природі.
Один з таких механізмів - географічна ізоляція, тобто територіальна роз'єднаність видів. У 1870 р М.Вагнер прийшов до висновку, що в одному ареалі може виникнути лише один вид, а отже, в різних - різні. Таке видоутворення він назвав географічним. Тепер його називають аллопатріческім (allos - інший, patris - батьківщина). Дарвін, проте, допускав, що обмін генами може обмежуватися не тільки географічним поділом популяцій-засновниць.
Іноді в ізольованому місці проживання з початкового вигляду виникають цілі "рої", або, як їх ще називають, "букети" нових видів. Приклади подібного роду - в'юрків Дарвіна з Галапагоських островів, риби і ракоподібні Байкалу, ціхлідових риби Великих африканських озер. Всі вони живуть в одному ареалі, що не схрещуючи, оскільки у них виробилися спеціальні механізми генетичної ізоляції: розмноження в різний час, відмінності в рисах шлюбного поведінки. Як правило, самці і самки різних видів просто не помічають один одного. Однак цей бар'єр легко подолати, наприклад, за рахунок імпринтингу (фіксації). Відомо, що в Євразії мешкають різні види качок і в природі вони практично не схрещуються. Але якщо яйце одного виду качки підкласти в гніздо іншого, що з'явився на світло каченя вважатиме себе представником виду названої матері, а ставши дорослим птахом, буде схрещуватися тільки з особинами, до нього належать. Іноді справа доходить до парадоксів. К.Лоренц писав, що пташеня білого павича, виріс в розпліднику рептилій, потім все життя намагався доглядати за гігантськими черепахами, не звертаючи уваги на найкрасивіших пав. Така ізоляція називається прекопуляціонной. Різні види не утворюють гібридів і зберігають свою самостійність, тому що просто не спаровуються. Цей спосіб найбільш поширений у вищих організмів, в першу чергу у птахів і ссавців.
Однак є численні випадки, коли такий міжвидовий бар'єр відсутній, але гібриди проте чи не утворюються, або бувають безплідні, тобто стерильні. Класичний приклад - стерильність мулів (гібридів від осла з кобилою) і лишків (що народилися від схрещування ослиці з жеребцем). Найбільше буває міжвидових гібридів серед рослин і нижчих тварин, скажімо, риб. Чому ж такі гібриди безплідні? Генетики раніше вважали, що справа в різному числі хромосом перехресних видів. У осла, наприклад, 62 хромосоми, у коня - 64, а в зрілих статевих клітинах - 31 і 32 відповідно. Після їх злиття в зиготі виявиться 63 хромосоми, які не можуть розділитися порівну при утворенні гібридних гамет. Тому у гібридного потомства статеві клітини будуть дефектними по числу хромосом, а значить, і нежиттєздатними.
Але це правило далеко не абсолютно. Повна генетична ізоляція між видами з різним числом хромосом зовсім не завжди обов'язкова. Більш того, існуй вона, еволюція не могла б йти - адже зміна числа хромосом - одиничний акт. Якщо "хромосомная" ізоляція була б абсолютною, особина, що зазнала мутації, вмирала б на самоті, не залишивши потомства.
Ми знаємо багато різних видів з однаковим числом хромосом, знаємо і внутрішньовидові форми з різним числом таких. Звести генетичну ізоляцію до коливання хромосомних чисел не представляється можливим.
У нашій лабораторії вже багато років ведуться роботи з пошуку якогось молекулярного критерію виду. Однак все методи, в яких використовувалася ДНК, були або недостатньо чутливими, або надмірно трудомісткими. Для цілей систематики рекомендувати їх було не можна.
Допомога прийшла до нас, коли були відкриті рестріктази - ферменти, що розщеплюють нитки ДНК по строго певних ділянок нуклеотидноїпослідовності. Один з таких ферментів - рестриктаза EcoRI (вперше виділена з бактерії Escherichia coli штаму R). Вона розщеплює ДНК на ділянках ГААТТЦ між гуаніном (Г) і аденін (А). Після обробки розчину ДНК цієї рестриктазой виходить суміш фрагментів різної довжини, яку поділяють електрофорезом в агарозному або поліакриламідному гелі і фарбують спеціальним флуоресцентним барвником. В результаті в плівці гелю утворюється набір смуг - своєрідний спектр фрагментів різної довжини, які далі можна ідентифікувати, якщо в цьому є необхідність, або порівнювати спектри різних видів.
За допомогою такого рестріктазного аналізу отримано багато даних за подібністю і відмінностей окремих генів, сателітних і мітохондріальних ДНК, ДНК вірусів і бактерій. Однак досить важко використовувати цей метод для з'ясування спорідненості організмів з ядерної ДНК. Пов'язано це з тим, що велика частина геномної ДНК тварин, рослин і грибів є унікальні нуклеотидні послідовності. Так як місця рестрикції в них розподіляються нерегулярно, в продуктах розщеплення утворюється суміш фрагментів, які чітко відокремити один від одного електрофорезом неможливо.
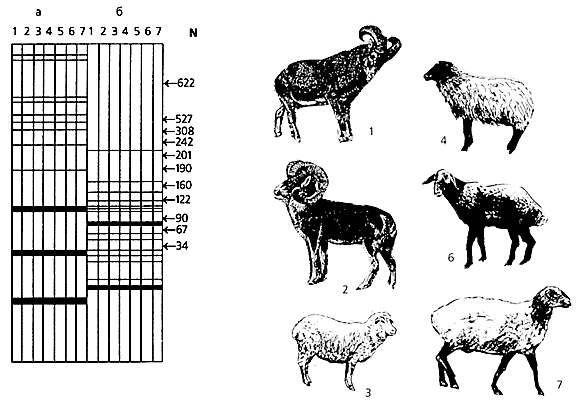
Спектри рестріктазного фрагментів ДНК двох видів диких гірських баранів і декількох порід домашніх овець.Фрагменти отримані розщепленням повторюваних послідовностей ДНК ферментом Msp I (а) і ферментом Hinf I (б).Видно, що таксонопрінти і диких, і домашніх тварин однакові.1 -муфлон, 2 - архар, 3 - казахська тонкорунна порода, 4 - кривуляста, 5 - Лінкольнского (її зображення не вдалося відшукати), 6 - Едільбаєвськая, 7 - гиссарськая.N - контрольні фрагменти, місце розташування яких на електрофореграмме вказано стрілками, а величина кожного виражена числом пар нуклеотидів.
Крім унікальних послідовностей, в ДНК є і багаторазово повторювані, або просто повтори. Вони розрізняються довжиною, розташуванням в геномі і кількістю копій (їх буває від кількох десятків до мільйона). Саме множинність копій повторюваних послідовностей робить поділ рестріктазного фрагментів ядерної ДНК успішним. Зауважимо, функція більшості повторів невідома, більш того, існує припущення, що вони не грають ніякої ролі. У нашій лабораторії висловлювалася гіпотеза про їх регуляторної функції, яку можна уподібнити артикль, закінченнях і приводами в письмовому тексті.
Перші два учасника (Медников і Шубіна) розробили метод, що дозволяє використовувати рестріктазного аналіз ядерної ДНК. Після попереднього видалення унікальних послідовностей повтори піддавалися ферментативному розщепленню і поділу електрофорезом. Цим методом було досліджено ДНК тихоокеанських лососів (кети, горбуші, чавичі, нерки, кижуча і Сіми) в розрахунку відшукати показник, який дозволив би відрізнити одне нерестовое стадо риб від іншого (тобто заходять на нерест в різні річки). Але результат виявився протилежним: набір рестріктазного фрагментів повторюваних послідовностей ДНК для кожного виду риб був специфічним і не залежав від статі, віку та приладдя до нерестового стада. Напрошувався висновок, що знайдений абсолютний критерій виду - мрія кожного систематика.
В принципі будь-який вид далекосхідних лососів, замість довгого морфологічного опису, можна охарактеризувати спектром рестріктазного фрагментів. Для кети він виглядає як Msp1 - 100, 250, 400, 550, 650, 800; Pst1 - 100, 250, 400, 550, 650, 800, 1700; Alu1 - 100, 250, 400, 550, 650, 800 (абревіатурою позначені назви рестриктаз, числами - кількість пар нуклеотидів, тобто довжина фрагментів). Примітно, що цей спектр був однаковим у кети і з річок Примор'я, і з Анадиря. У горбуші він інший: Msp1 - 200, 420, 640; Pst1 1250, 1300, 1700, 2350, 2650; Alu1 - 250, 350, 520, 630, 680.
Результат нас не тільки здивував, але й засмутив, тому що ми шукали генетичні відмінності стад всередині одного виду. Та й як видового критерію спектр виявився мало придатний, так як його визначення за нашою методикою було досить трудомістким. Це, до речі, ахіллесова п'ята тільки що розроблених нових методів. Вперше прокладена дорога виявляється найважчим і нерідко забувається.
Наша ідея воскресла після роботи В.В.Гречко (Інститут молекулярної біології РАН) і А.Н.Федорова (Інститут молекулярної генетики РАН), які запропонували більш простий спосіб (він названий методом таксонопрінтов), що дозволяє вивчати розподіл фрагментів повторюваних послідовностей. За цим методом ДНК гидролизуют короткощепящімі рестріктазамі без відділення унікальних послідовностей від повторюваних, а що утворилися полінуклеотіди мітять радіоактивним фосфором (32Р) по кінцевим залишкам. Після цього суміш розділяють електрофорезом, виявляють фрагменти за допомогою радиоавтографии і в підсумку отримують їх спектр, або таксонопрінт.
Результати дослідження об'єктів методом таксонопрінтов і нашим колишнім способом виявилися подібними. Які ж молекулярні характеристики виду і популяцій нам вдалося отримати?
Таксонопрінти окремих популяцій всередині виду (від риб і ящірок до людини) ідентичні. Чи не відрізняються вони і в більшості географічно ізольованих популяцій. Наприклад у пустельних вухатих їжаків спектр фрагментів ДНК однаковий, незалежно від того, живуть тварини в околицях Ашхабада, Кара-Коли чи Ташкента [ 1 ]. Ідентичні таксонопрінти кети, нереститься в річках від Анадиря до Примор'я; не розрізняються за цим молекулярному ознакою і раси людини.
Але в деяких випадках спектр фрагментів ДНК всередині одного виду має невеликі відмінності, наприклад, у добре відомій лососевої риби гольця, поширеної від Північної Європи до Далекого Сходу, а також в Америці. Існують дві форми цього виду - житлова, тобто прісноводна, і прохідна - тільки заходить в річки під час нересту. Скрізь, де є обидві форми (в річках Шпіцбергена, на півночі Євразії від Норвегії до Таймиру), їх таксонопрінти ідентичні. Але в географічно ізольованих популяціях Східного Сибіру, де живуть лише житлові Лису гору, їх ДНК вже відрізняється одним-двома фрагментами. Це - Лису гору з озера Лабинкир, з озер Забайкалля і Чукотки, а також далекосхідний голець - мальма. Можна зробити висновок, що в географічно ізольованих ареалах йде поступове алопатрія [ 2 ].
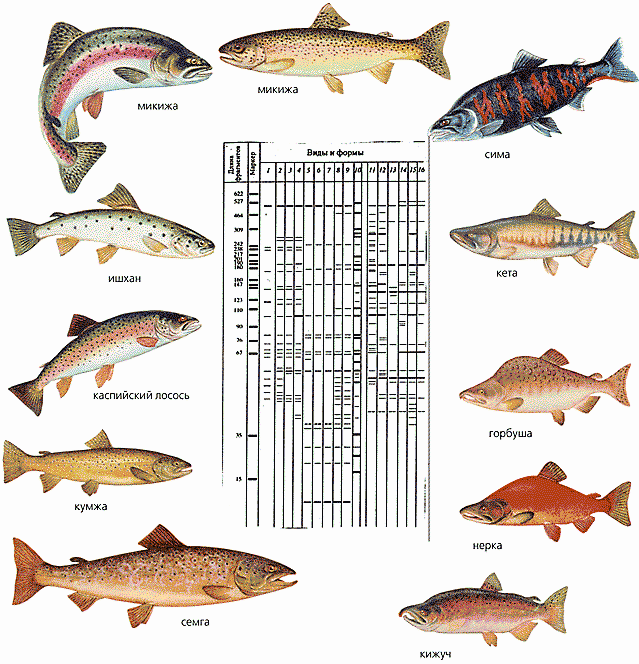
Таксонопрінт ДНК атлантичних і тихоокеанських лососів і форелі.Для фрагментації повторюванихпослідовностей використаний фермент Tag I. 1 - сьомга;2 - кумжа;3 - каспійський лосось;4 - ішхан (севанская форель);5 - мікіжа (угорі ліворуч);6 - мікіжа, подібна до лососем Кларка;7 - житлова форма мікіжа;8 - райдужна форель;9 - мікіжа північноамериканська;10 - лосось Кларка;11 - сіма;12 - кета;13 - горбуша;14 - нерки;15 - кижуч;16 - чавичі.Для кожного виду і навіть форми цих риб набір фрагментів ДНК специфічний, тільки у двох форм мікіжа (6, 7) він ідентичний.
Інша річ, якщо близькі види мешкають спільно - їх таксонопрінти відрізняються досить різко. Такі "спектри" різні, наприклад, тих, що живуть в Підмосков'ї звичайного і білогрудої їжаків. Мало подібності і в наборі фрагментів ДНК двох видів гольців, що населяють чукотське озеро Ельгигитгин, - арктичного гольця і малоротой палії, яка, до речі, і за морфологічними ознаками відрізняється від інших гольців настільки, що її виділили в окремий рід Salvethymus.
Все це наводить на думку, що у симпатрических видів, що мешкають спільно і, мабуть, спільно що виникли, дивергенція швидко проявляється у вигляді відмінностей таксонопрінтов. Але вони залишаються близькими або навіть ідентичними у аллопатрических видів, чиї ареали розділені відстанню. Хороший приклад - американський бізон і європейський зубр. Вони походять від одного виду (Bison priscus), свого часу населяв величезну територію - від сучасної Британії до східного берега Північної Америки. Після того як материки розділилися, нащадки раніше єдиного виду накопичили чимало морфологічних відмінностей, але таксонопрінти залишилися ідентичними. До речі, бізон і зубр вільно схрещуються, і гібриди характеризуються гетерозисом - гібридної потужністю. Легко схрещуються в неволі, а також на стиках місць проживання і дають плідне потомство гірські барани - європейський муфлон, Переднеазіатський Уріа і центральноазіатський архар, що населяють різні гірські системи. Таксонопрінти цих видів практично однакові [ 3 ]. Схоже, що такі види генетично не ізольовані, хоча мають багато різняться морфологічних рис, за якими систематики вважають їх самостійними.
Виникає природне запитання: для чого ж у геномі існують повторювані послідовності, які виявляються методом таксонопрінтов? На наш погляд, ці ділянки ДНК грають роль маркерів, тобто розпізнають гени, які повинні включатися в дію в розвивається зиготі. Запускають їх регуляторні білки, наявні в цитоплазмі заплідненої яйцеклітини. У сперматозоїдах цитоплазми немає, тому немає і цих білків. Якщо такі фрагменти ДНК однакові або дуже близькі у батька і матері, батькові і материнські хромосоми працюють спільно, забезпечуючи нормальний розвиток зиготи.
А якщо розрізняються? Тоді регуляторні білки яйцеклітини з працею дізнаються гени, привнесені в неї спермием, і їх робота виявляється загальмованою, зигота перестає розвиватися, гине, і ми констатуємо випадок генетичної міжвидовий ізоляції. Генетики добре знають так званий материнський ефект, за рахунок якого батьківські гени різних видів або далеко розійшлися різновидів включаються в роботу пізно або не включаються взагалі. З точки зору класичної генетики - це нонсенс, адже хромосоми обох батьків рівноправні.
Можливий відносно простий експеримент для підтвердження материнського ефекту. Якщо в запліднену яйцеклітину міжвидового гібрида за допомогою мікроманіпулятора ввести цитоплазму яйцеклітини батьківського виду, материнський ефект буде знято: регуляторні білки цитоплазми батьківській лінії активують гени батьківського генома. Цим же способом можна стимулювати розвиток міжвидових гібридів, які зазвичай не виникають. Нарешті, цитоплазмой яйцеклітини можна активувати вихідні гени для отримання клонованого зародка з недиференційованої соматичної клітини.
Розглянута ізоляція - наслідок роботи специфічного молекулярного механізму. Він властивий організмів, які розмножуються статевим шляхом, причому тільки симпатрических видів з посткопуляціонной ізоляцією. Для роз'єднаних відстанню видів такого механізму не потрібен, його у них і не існує. Тому подібні або ідентичні таксонопрінти ДНК бізона і зубра, європейського і амурського їжаків.
Інший механізм виникнення репродуктивного бар'єру у видів з прекопуляціонной ізоляцією, наприклад у птахів. У них близькі види мають ідентичні таксонопрінти ДНК, їм ні до чого різниця між сигнальними послідовностями, оскільки самці і самки різних видів просто не впізнають один одного і не схрещуються.
Наша гіпотеза про регуляторну функцію повторів ДНК підтвердилася при вивченні геномів тихоокеанських лососів (кети, горбуші, нерки, чавичі, Сіми і кижуча) і форелі (камчатської мікіжа і американських стальноголового лосося, райдужної форелі і лосося Кларка). Таксонопрінти різних видів чітко розрізнялися [ 4 , 5 ].
Подальші дослідження привели нас до відкриття нового способу генетичної ізоляції, який раніше не був помічений.
У багатьох наших північніх озерах и річках співіснують Різні види Сігов риб, около до лососевих. Кроме сига, до них відносяться байкальский и Північний Омуль, гігантськіх Розмірів нельма, дрібна ряпушка и цілий ряд других. Природно було очікувати істотних відмінностей в таксонопрінтах співіснують видів.
На ділі виявилося не так: ці "паспорта" ДНК були дуже подібними, а то і ідентичними, за винятком американських сигів-праників, два види яких проникли в Азію. Відомо, що різні сиги, що мешкають спільно, легко схрещуються. У Печорі, наприклад, кількість гібридних особин сига і омуля сягає третини від загальної чисельності обох стад. Значить, ці два види давним-давно повинні були злитися в процесі еволюції в один. Оскільки цього не відбувається, повинен існувати якийсь механізм, який охороняє самостійність видів, незважаючи на постійне схрещування.
Розгадку ми знайшли в старих роботах Н.І.Ніколюкіна, Г.Свердсона і ряду інших дослідників. Там повідомлялося, що міжвидові гібриди сигових риб відрізняються потужним гетерозисом. У зв'язку з цим виникла ідея заселяти водойми гібридами звичайного сига і ріпуса (великої форми ряпушки).
Ідею, однак, втілити не вдалося. Якщо перше покоління гібридів було великим і життєздатним, то у їхніх нащадків з'являлися численні каліцтва: зрощені або викривлені хребці, щелепи як у мопсів, одне око або дві голови і т.д. Забезпечити їх розмноження вдавалося тільки схрещуванням гібридів першого покоління з одним з батьківських видів, тобто поворотним (поглинювальним) схрещуванням. Але наступне покоління знову втрачала гібридні якості.
Отже, існують щонайменше два механізми генетичної посткопуляціонной ізоляції. Перший з них, найбільш відомий, запобігає утворенню гібридів або обумовлює їх стерильність або нежиттєздатність. У таких видів таксонопрінти ДНК розрізняються. У видів з подібними або ідентичними таксонопрінтамі перше покоління гібридів зберігає риси обох батьків, плідно і володіє гібридної потужністю. Саме тут відбувається обмін генами між видами. Однак друге покоління нежиттєздатною, воно не відтворює себе в потомстві, але може схрещуватися з батьківськими видами. Зворотне схрещування підтримується в природі автоматично, якщо, скажімо, гібридні самці стерильні, як у окуневих риб роду Aetheostoma.
Схоже, другий механізм поширений в природі не менш, ніж перший. За даними Ніколюкіна, нащадки від гібридизації різних видів осетрових риб (осетер ґ білуга, білуга ґ севрюга, осетер ґ севрюга) схрещуються не так між собою, скільки з батьківськими видами. Те ж відзначено для сигових (ряпушка ґ сиг) і коропових (плітка ґ лящ, краснопірка ґ густера) риб. Подібні міжвидові гібриди в другому і наступних поколіннях "розчиняються" в батьківських стадах. Якщо чисельність одного батьківського виду істотно перевершує чисельність іншого, другий витісняється першим з водойми. Так, дрібна, але численна ряпушка витісняє з водойми сига, плітка - ляща і т.д. Г.Свердсон назвав це явище генетичним паразитизмом.
Широко чи поширений цей механізм ізоляції в природі? Зустрічається він і в інших групах тварин? Хоча даних на цей рахунок мало, ми можемо відповісти на ці питання ствердно. Наприклад, легко схрещуються індиговий і блакитна вівсянки - два види американських пташок, що мешкають в Скелястих горах. Незважаючи на те, що кількість гібридних особин досягає 70% від загальної чисельності, види зберігають свою самостійність. Ще одне підтвердження механізму посткопуляціонной ізоляції, що приводить до міжвидового схрещування і утворення плідних гібридів, які "розчиняються" в батьківських видах, - віргінський олень і олень-мул з Північної Америки: у них особини одного виду можуть мати мітохондрії іншого. Подібні феномени описані також у деяких видів гризунів і жаб.
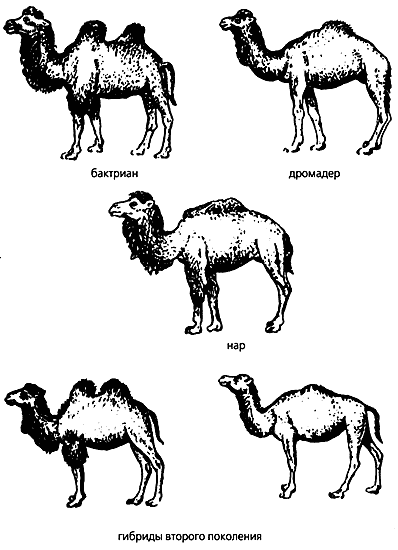
Вихідні види і гібриди верблюдів.Нари - перше покоління від схрещування двогорбої верблюда бактріан з одногорбих дромадерів - відрізняються від батьків більшої потужністю, але в другому гібридному поколінні господарсько цінні якості наров губляться.
Більш того, цей механізм генетичної ізоляції здавна використовується в практиці, чому немало прикладів. Нари - гібриди двогорбої і одногорбого верблюдів - високо цінуються за гібридну потужність, але так як вона втрачається вже в наступному поколінні, господарсько цінні якості наров підтримують, схрещуючи їх з одним з батьківських видів. Міжвидові гібриди (а на думку інших систематиків навіть міжродовим) яка і великої рогатої худоби характеризуються мясистостью і жирномолочность. Але у них самці неплідності, тому для збереження цих якостей гібридних самок схрещують з биками або самцями яків. Стерильними бувають гібридні самці при межродовом схрещуванні - бізонів (або зубрів) з великою рогатою худобою.
Було б заманливо виявити ті послідовності ДНК, які відповідають за малу життєздатність другого гібридного покоління і необхідність поворотного схрещування. Але це вже не відноситься до теми даної статті.
література
1. Баннікова А.А. та ін. Порівняння повторюваних послідовностей ДНК ссавців сімейства Erinaceidae методом рестріктазного аналізу // Генетика. 1995. Т.31. №11. С.1498-1506.
2. Максимов В.В. та ін. Гірський голець - нова форма арктичного гольця (рід Salvelinus) з водойм Таймиру // Зап. іхтіології. 1995. Т.35. №3. С.296-301.
3. Мельникова М.М. і ін. Дослідження поліморфізму і дивергенції геномної ДНК на видовому і популяційному рівні (на прикладі порід диких і домашніх овець) // Генетика. 1995. Т.31. №8. С.1120-1131.
4. Шубіна О.О., Медников Б.М. Сімейства повторюванихпослідовностей в ДНК далекосхідних лососів роду Oncorhynchus // молекулярну. біологія. 1986. Т.20. №4. С.947-956.
5. Медников Б.М. та ін. Проблема родового статусу тихоокеанських лососів і форелі (геносістематіческій аналіз) // Зап. іхтіології. 1999. Т.39. №1. С.14-21.
Чому ж такі гібриди безплідні?Які ж молекулярні характеристики виду і популяцій нам вдалося отримати?
Виникає природне запитання: для чого ж у геномі існують повторювані послідовності, які виявляються методом таксонопрінтов?
А якщо розрізняються?
Широко чи поширений цей механізм ізоляції в природі?
Зустрічається він і в інших групах тварин?